一句话亮点
本文通过体外演化实验系统证明,反义抗生素(asobiotics)的耐药性演化路径主要由其细胞穿透肽(CPP)的身份决定——(KFF)₃-K 依赖 SbmA 主动转运,极易通过失活该通路产生高水平耐药;而 (RXR)₄XB 则因独立于主动转运,几乎无法诱导稳定耐药,仅偶尔出现靶点结合区突变。
背景/痛点
抗菌素耐药性(AMR)已是全球健康头号威胁之一。传统抗生素一旦上市,耐药几乎必然出现,并且这种演化几乎不可能被"跑赢"。因此,研究者把希望转向了序列可编程的抗微生物药物——即反义寡核苷酸(ASO)类抗生素,也叫 asobiotics。
这类药物的逻辑很漂亮:设计一段与必需基因 mRNA 翻译起始区互补的 PNA(肽核酸)或 PPMO,通过空间位阻阻止核糖体结合,从而关闭靶基因表达。而且,如果细菌对某一序列产生耐药,只需更新 PNA 序列即可绕过,有点像 mRNA 疫苗的更新策略。
然而,一个关键问题一直悬着:细菌到底有多容易对 asobiotics 产生耐药?耐药机制是什么?不同递送肽之间差异有多大?此前只有零散报道,缺乏系统性比较。本文正是冲着这个空白来的。
@方法论点评:这是一篇典型的“机制-演化”交叉研究,用体外演化实验(实验室加速进化)代替临床分离株分析,目的是“提前预判”耐药路径,属于抗菌药物研发中重要的前瞻性风险评估。
推理链分步拆解
1. 他们先建了一套"药物梯度爬升"演化模型,看四种病原体对四类 asobiotics 的反应
研究者选了四种临床相关的革兰氏阴性菌:E. coli、K. pneumoniae、S. enterica、P. aeruginosa,并构建了四种 CPP-PNA 组合:
KFF-acpP(靶向 acpP) KFF-rpsH(靶向 rpsH) D-KFF-acpP(D 型肽,抗蛋白酶降解) RXR-acpP(精氨酸丰富肽,已知不依赖 SbmA)
他们用了一个叫"药物选择梯度"(drug selection ramp)的连续传代方案:从 1/2×MIC 开始,每 4 代翻一倍,最终达到 4×MIC,共 16 代。每个组合 10 个生物学重复。
结果很干脆:KFF-acpP 在所有菌株中都诱导出最明显的 MIC 上升,S. enterica 平均上升 17.6 倍;而RXR-acpP 在 E. coli 中 8/10 个重复完全没有 MIC 变化;D-KFF-acpP 也几乎没变化。
@方法论点评:这里用“无义 PNA”作为阴性对照,排除了传代本身和 CPP 非特异性毒性带来的假阳性。10 个重复的设计也保证了后续变异频率统计的可靠性。
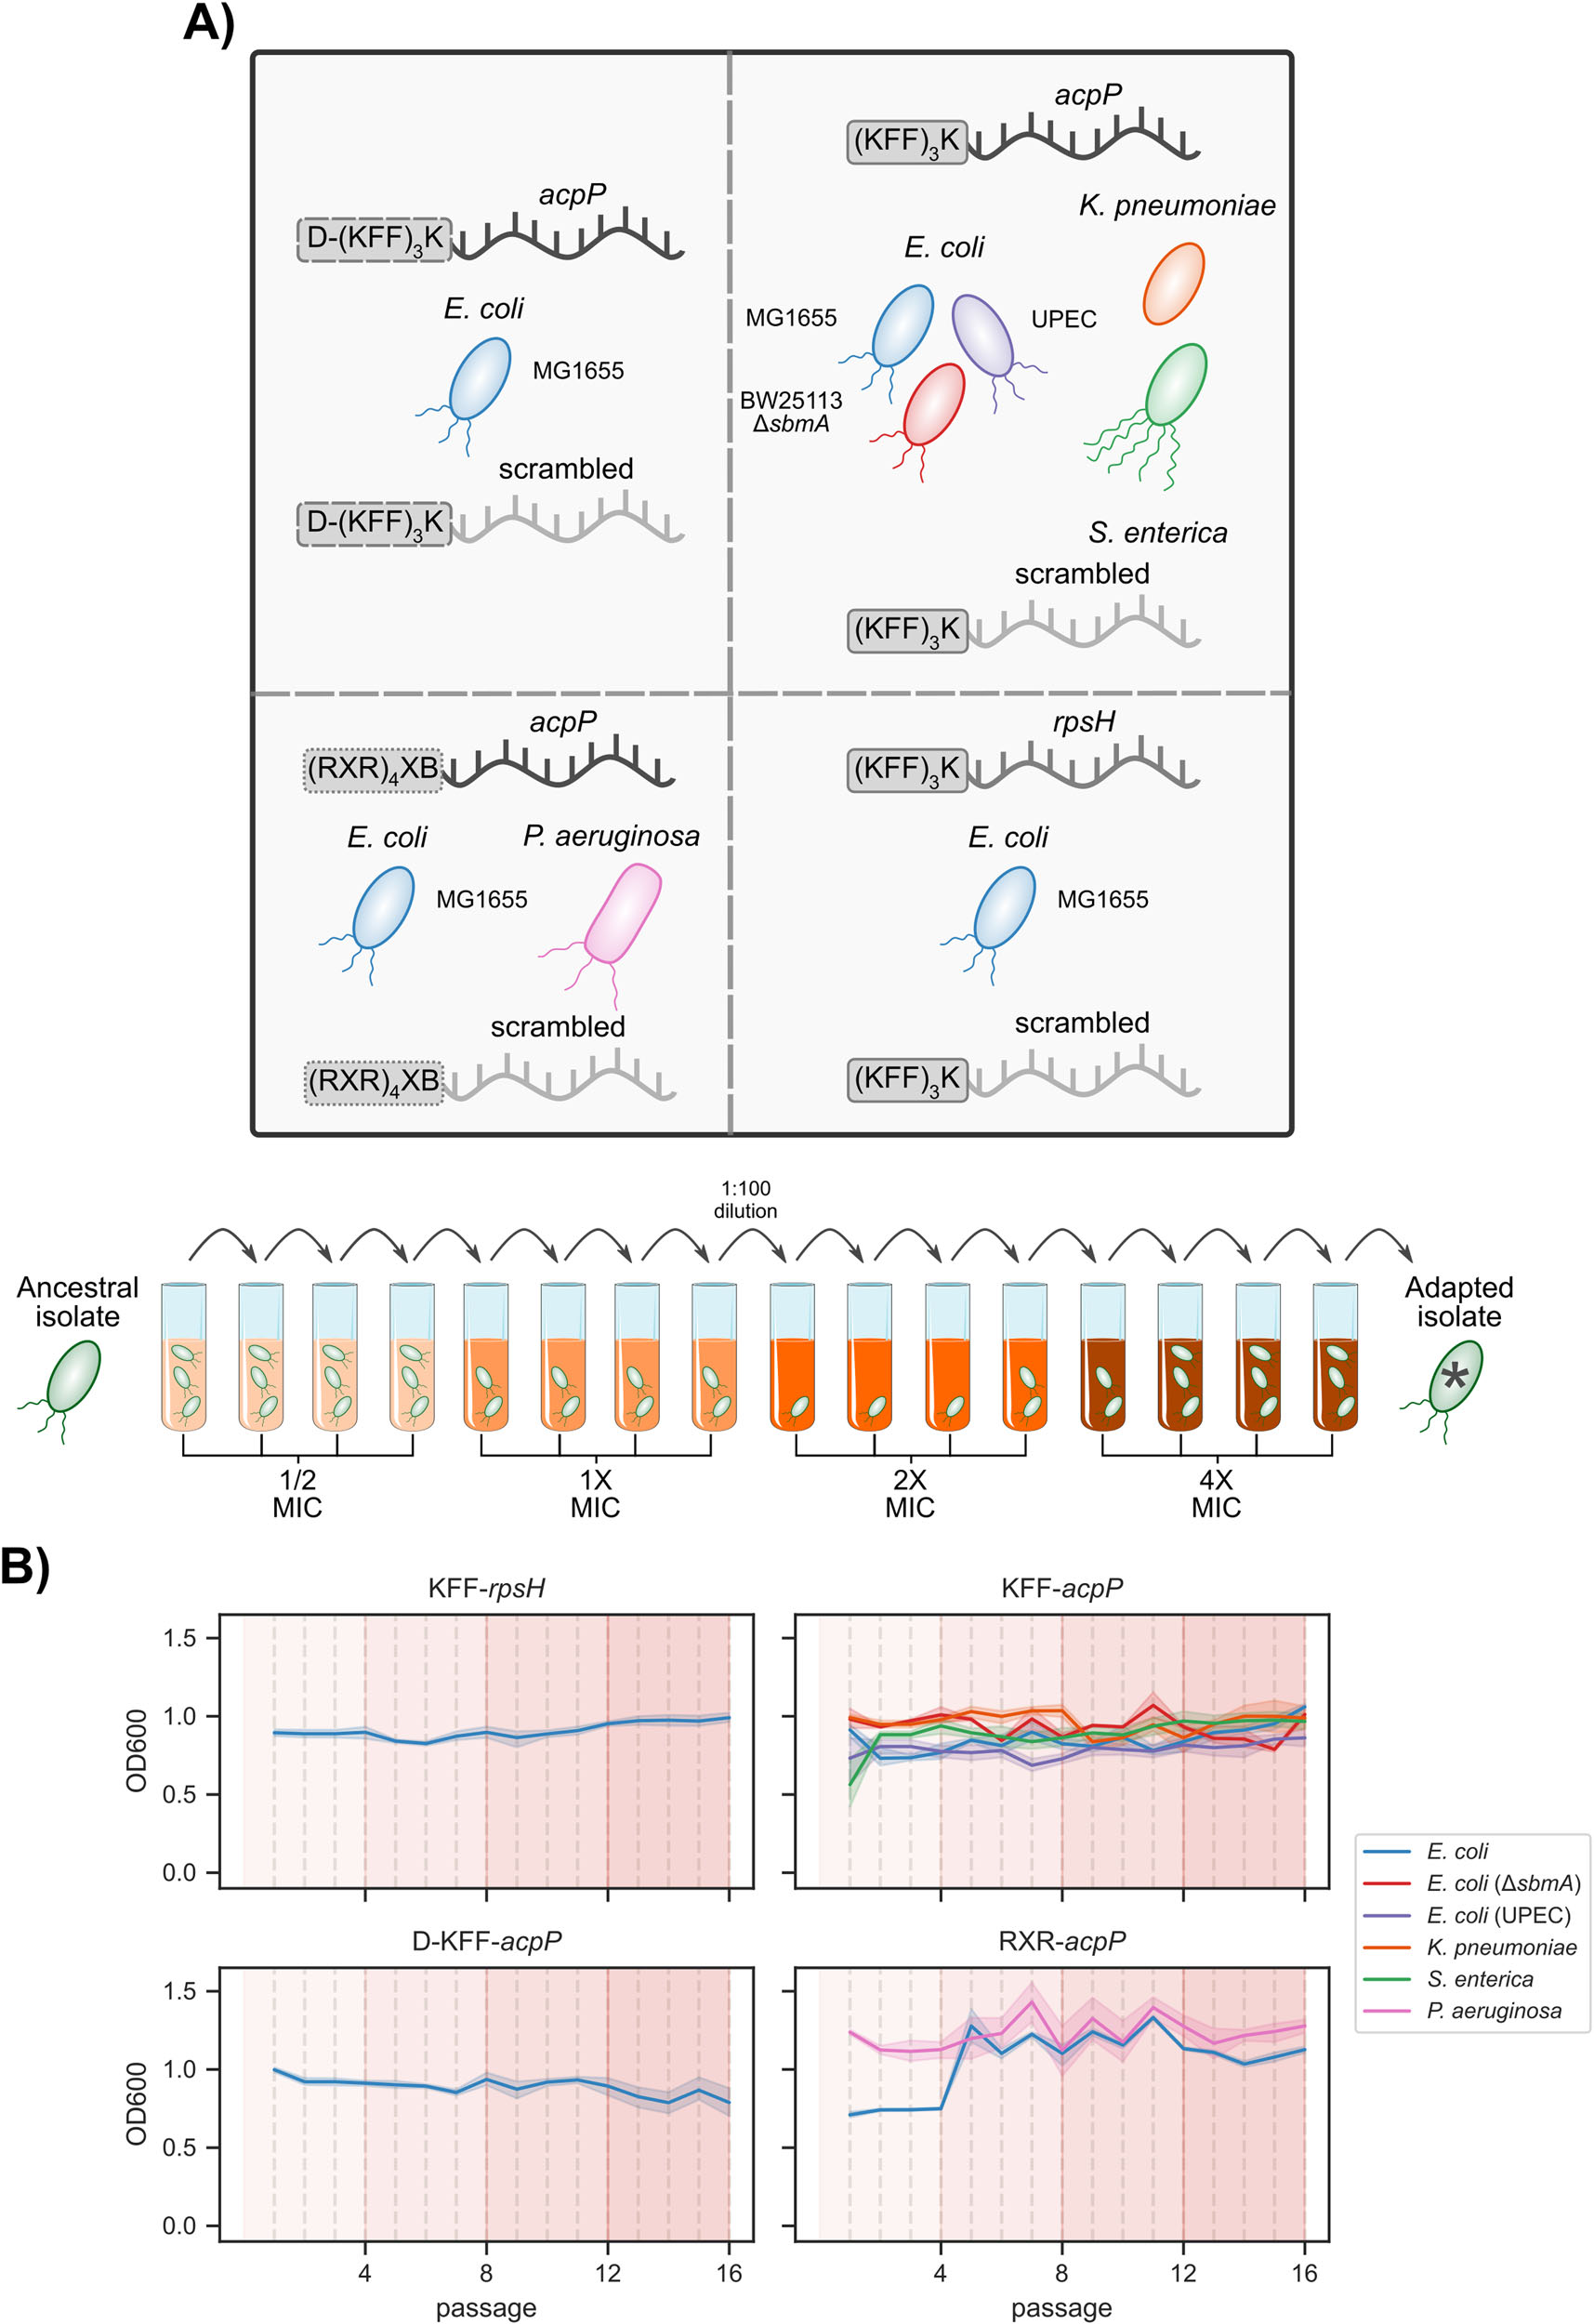
Fig. 1. A drug selection ramp to induce resistance to asobiotics. A Schematic representation of the species and asobiotic constructs tested, as well as the serial passaging protocol. Test tube icon by Servier, via Bioicons (CC-BY 3.0). B Daily(图注取自PDF文本层,来源:Nature Communications, 2026)
2. 接着,他们用全基因组测序锁定 KFF 的核心耐药基因:sbmA
既然 KFF 系列耐药最明显,那基因突变一定集中在某个关键节点上。果然,所有 KFF-acpP 处理的菌株中,sbmA 基因都在 ≥6/10 的重复里发生了功能丧失型突变。KFF-rpsH 处理的 E. coli 中,sbmA 突变频率高达 9/10。
SbmA 是一个内膜转运蛋白,已知负责将 KFF-PNA 从周质空间运入胞质。这个结果并不意外,但它被跨物种验证了——S. enterica 和 K. pneumoniae 同样高频突变 sbmA,说明这不是 E. coli 特有的"小把戏"。
更有意思的是,在 E. coli 中他们还频繁观察到yaiW突变(与 sbmA 共转录的外膜脂蛋白),并且双敲除 sbmA/yalW 的 MIC 比单敲 sbmA 还高 2 倍,提示 YaiW 可能参与了 KFF-PNA 的外膜初始进入环节。
@方法论点评:这里是典型的“基因型-表型关联”验证:先通过群体测序发现高频突变基因,再通过等位基因重建(scarless allelic replacement)做因果验证。区分“关联”和“因果”是耐药机制研究的金标准。
3. 那 D-KFF 和 RXR 为什么不行?这正好反证了 SbmA 的重要性
D-KFF 因为采用了 D 型氨基酸,能抵抗周质蛋白酶降解,因此不依赖 SbmA 切割转运。果然,D-KFF-acpP 处理后,sbmA 突变频率为零。这说明 KFF 的脆弱性正来源于它对 SbmA 的"刚需"——只要细菌把 SbmA 敲掉,药就进不来了。
而 RXR 的情况更极端。RXR 已知通过膜电位依赖机制直接跨膜进入胞质,完全不依赖主动转运蛋白。那按理说,细菌应该很难通过"堵门"来耐药。实验也验证了:RXR-acpP 处理的 10 个 E. coli 重复中,只有 2 个出现 MIC 上升(2 倍和 4 倍),而这两个恰好都在acpP PNA 结合位点中央区域出现了 SNPs(T>C 和 G>A)。
这正是靶点序列突变导致的耐药,但频率很低(~30% 的等位基因频率),而且 acpP 是高度必需基因,突变本身可能伴有显著适应度代价。
@方法论点评:这里巧妙利用了“不同 CPP 的已知机制差异”作为天然实验对照——如果 KFF 依赖 SbmA,那么 D-KFF 和 RXR 就是不依赖 SbmA 的“功能对照”,三者比较直接分离出“ uptake ”这个变量的贡献。
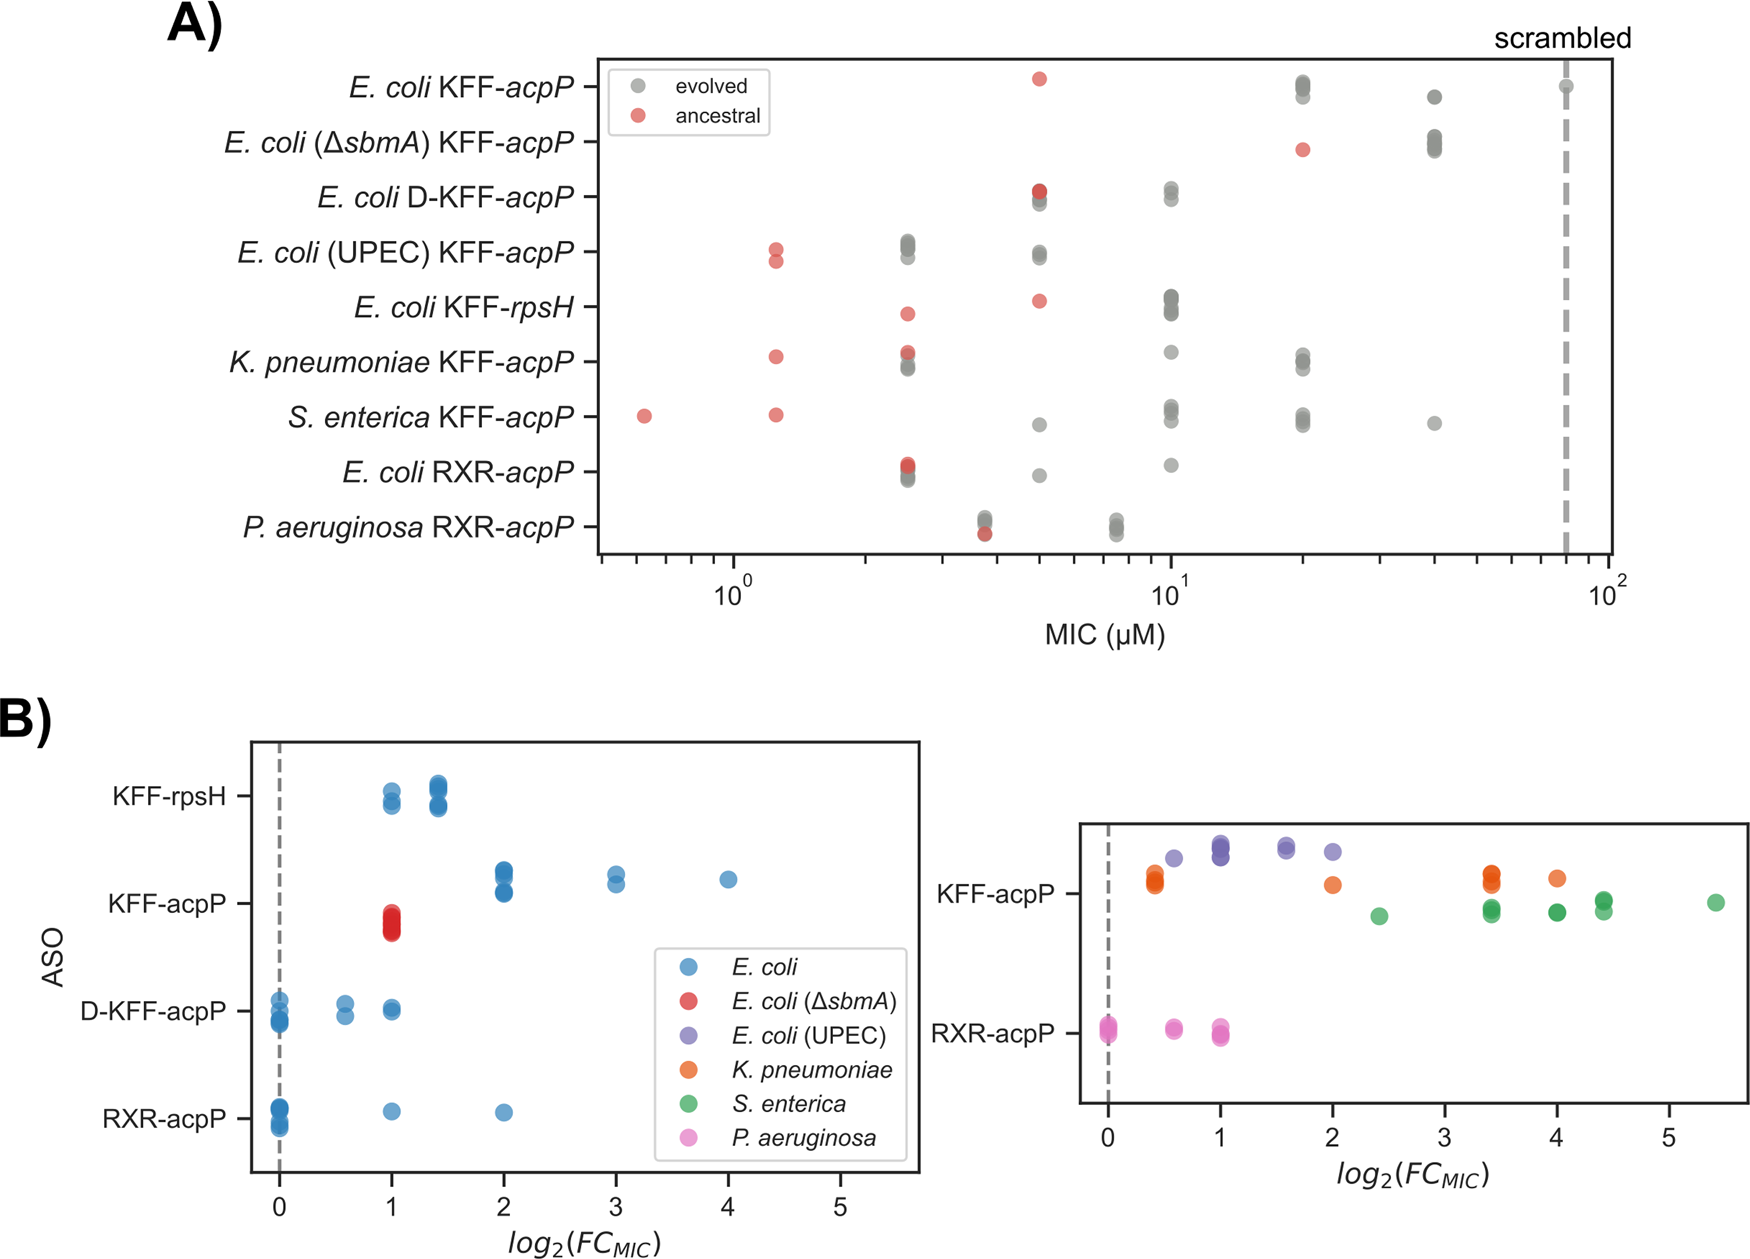
Fig. 2. Changes in asobiotics sensitivity across species and strains. A Absolute values for the minimum inhibitory concentration (MIC) for all ancestral isolates (red, 2 replicates) and evolved samples (gray, 10 replicates). The vertical gray dashed line indicates the MIC of the samples adapted to the scrambled asobiotics across all species and constructs. B Fold-change increase in minimum inhibitory(图注取自PDF文本层,来源:Nature Communications, 2026)
4. 那么问题又来了:除了 sbmA,还有没有别的耐药通路?
研究者注意到,即使是 sbmA 突变的样本,不同重复之间 MIC 上升幅度仍有差异(KFF-acpP 在 E. coli 中从 2 倍到 16 倍不等)。于是他们深挖了那些"额外突变"。
在 MIC 最高的一个样本(16 倍上升)中,他们发现了一个私有的prfB T246S 突变。prfB 编码肽链释放因子 RF2,负责终止翻译并回收 stalled 核糖体。这个位点已知能提高终止效率。
他们通过等位基因重建证实,单是 prfB T246S 就足以赋予 4 倍 MIC 上升,而且这个突变与 sbmA 突变是独立出现的(该样本没有 sbmA 突变)。这意味着存在一条不依赖 uptake 的耐药路径——可能是通过提高整体翻译效率或直接与 PNA 结合的核糖体互作,来对冲 PNA 的抑制作用。
此外,他们还观察到 UPEC 中 prfA 突变、S. enterica 中 rfbF(LPS O 抗原合成)突变、K. pneumoniae 中 mdtC(外排泵组分)突变等,提示不同物种可能通过调整外膜结构或应激响应来间接影响 PNA 敏感性。
@方法论点评:这里用的是“极端表型样本对比法”——在整体耐药背景相似的情况下,把 MIC 最高的几个样本单独拎出来找“额外突变”,能有效过滤掉背景噪音,发现低频但功能重要的第二位点突变。
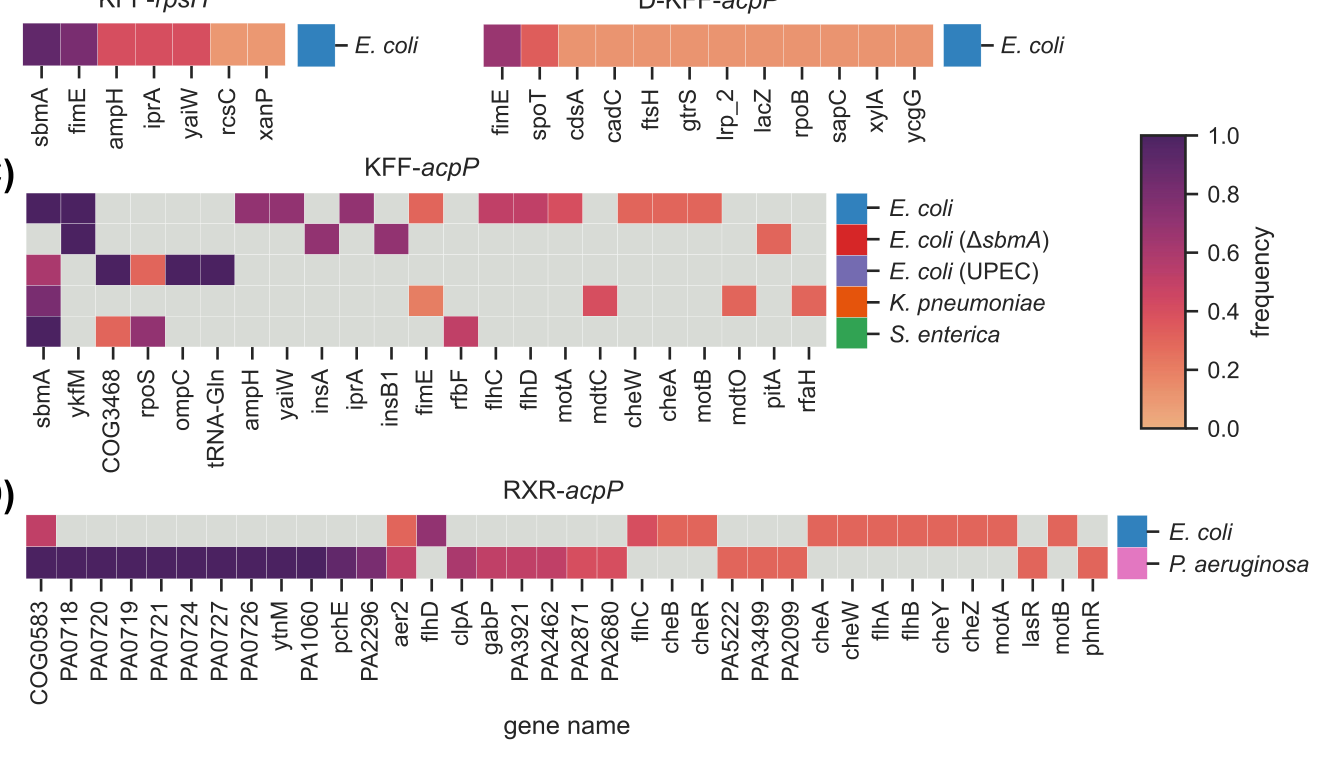
Fig. 3. Common genetic variants induced during the drug selection ramps. The heatmaps indicate the proportion of replicates for each strain / asobiotic combi- nation (A for KFF-rpsH, B for D-KFF-acpP, C for KFF-acpP, D for RXR-acpP) for which we observed genetic variants in each gene. Gray boxes indicate that no variant was(图注取自PDF文本层,来源:Nature Communications, 2026)
5. 最后,他们把整个发现串成一条因果链
总结一下:
KFF-PNA→ 依赖 SbmA 主动转运 → sbmA 失活突变是主要耐药路径(跨物种保守)→ 同时 yaiW 协同,prfB 提供第二条独立路径。 D-KFF-PNA→ 抗蛋白酶 → 不依赖 SbmA → 难以产生高水平耐药。 RXR-PNA→ 膜电位依赖直接跨膜 → 无转运蛋白可被失活 → 仅靶点序列突变偶发出现 → 但靶点突变频率低、代价高,且可通过更新 PNA 序列轻松绕过。
核心结论:CPP 的选择直接决定了 asobiotics 的“演化脆弱性”。依赖主动转运的 CPP 更容易被细菌通过简单基因失活而逃逸;而采用物理跨膜机制的 CPP,则几乎不给细菌留下可操作的耐药靶点。
@方法论点评:整篇文章的逻辑链是“表型差异 → 基因型筛查 → 因果验证 → 机制解释 → 跨物种验证”,每一步都有对应的对照设计,推理层层递进,是耐药演化研究的范本。
核心结论
(KFF)₃-K 介导的 PNA 递送在四种临床革兰氏阴性菌中均高频诱导 sbmA 失活突变,这是其最主要的耐药机制,跨物种保守。 YaiW 与 SbmA 协同参与 KFF-PNA 的跨膜转运,双缺失可进一步增强耐药。 prfB 释放因子突变提供了一条不依赖 uptake 的耐药新路径,提示 PNA 的作用可能涉及核糖体回收调控。 RXR 肽因其不依赖主动转运的跨膜机制,几乎不诱导稳定耐药,是更具演化韧性的 CPP 候选。 靶点结合区突变虽能产生耐药,但频率低、代价高,且可通过更新 PNA 序列快速规避。
对耐药/DTP/PGCC 的启示
递送系统决定耐药演化瓶颈:在肿瘤靶向治疗中,药物进入细胞的途径同样决定了耐药的"脆弱点"。如果某个靶向药高度依赖某一特定转运蛋白(如 SLC 家族),那么肿瘤细胞可能通过下调该转运蛋白快速逃逸——这与本文 SbmA 失活如出一辙。设计药物时应优先考虑不依赖单一转运蛋白的递送策略。 “非经典"耐药路径可能指向新的细胞应激调节枢纽:prfB 突变赋予耐药,提示我们关注那些"看起来不直接相关"的管家基因(如翻译终止因子、核糖体回收因子)。在 DTP 细胞中,翻译调控和核糖体功能重塑已被报道与耐受性相关,本文为此提供了具体的"可突变靶点"范例。 序列可编程药物的"可更新性"是应对 PGCC 相关耐药的理想特性:PGCC 常通过基因组再复制和突变积累产生高度异质性耐药。对于靶点序列突变导致的耐药,传统药物往往束手无策,但 asobiotics 的序列更新能力使其可以像"打补丁"一样快速应对——这在文中靶点突变实验中得到验证。
局限
体外演化实验采用固定浓度梯度方案,可能与临床实际(波动浓度、组织渗透差异)存在差距,某些耐药路径可能被低估或高估。 P. aeruginosa 仅测试了 RXR-acpP,未测试 KFF 系列(因已知无效),导致该物种的跨物种比较不完整。 acpP 靶点突变的重建尝试失败(因 acpP 高度必需),未能直接验证靶点突变的适应度代价,仅能通过突变频率间接推断。 多数新发现的突变基因(如 ykfM、xanP)尚未进行单基因重建验证,其功能贡献仍属推测。
来源
期刊:Nature Communications,2026。DOI: 10.1038/s41467-026-76357-y