一句话亮点
Buissant des Amorie 等发现,结直肠癌在极早期(T1期)就已普遍获得癌胚(OnF)细胞状态,这种状态由肿瘤微环境中特定的癌相关成纤维细胞(CAF)亚型通过 TGF-β 和 PGE2 信号诱导,是转移发生的前提条件。
背景/痛点
结直肠癌的细胞可塑性近年来越来越被认为是疾病进展的标志。正常肠道中 LGR5+ 干细胞维持稳态,而组织损伤会诱导一种类似胎儿的再生状态,表达 ANXA1、MMP7、EMP1、LAMC2 等标志物。肿瘤发生过程中,这种再生程序被异常激活,形成所谓"癌胚(OnF)“状态。
有意思的是,OnF 状态在多种癌种中都存在——肺癌、胰腺癌都有类似现象,说明这是癌细胞劫持发育/再生程序的一个通用原则。但问题是:OnF 一直被认为是晚期转移性疾病的特征,那它到底什么时候出现的?是什么触发的?
已有的研究提示结直肠癌可能存在早期转移播种,即使没有明确的遗传驱动因素。但 OnF 状态出现的时机和触发因素一直不清楚。
推理链分步拆解
1. 先看 OnF 在早期肿瘤中存不存在——空间转录组打头阵
作者假设 OnF 状态可以在早期 T1 期结肠病变中出现。他们做了多区域空间转录组分析,比较了肿瘤核心和侵袭前沿的癌细胞及 TME 差异。
结果很直接:虽然是早期病变,OnF 细胞普遍存在,而且集中在侵袭前沿。这说明 OnF 状态在转移发生之前就已经出现,可能是转移的"必要非充分"条件。
@方法论点评:这是典型的"先看现象是否成立”——用空间转录组锁定 OnF 细胞的空间分布,而不是直接用已知标志物做免疫染色,好处是可以无偏地发现更多差异。
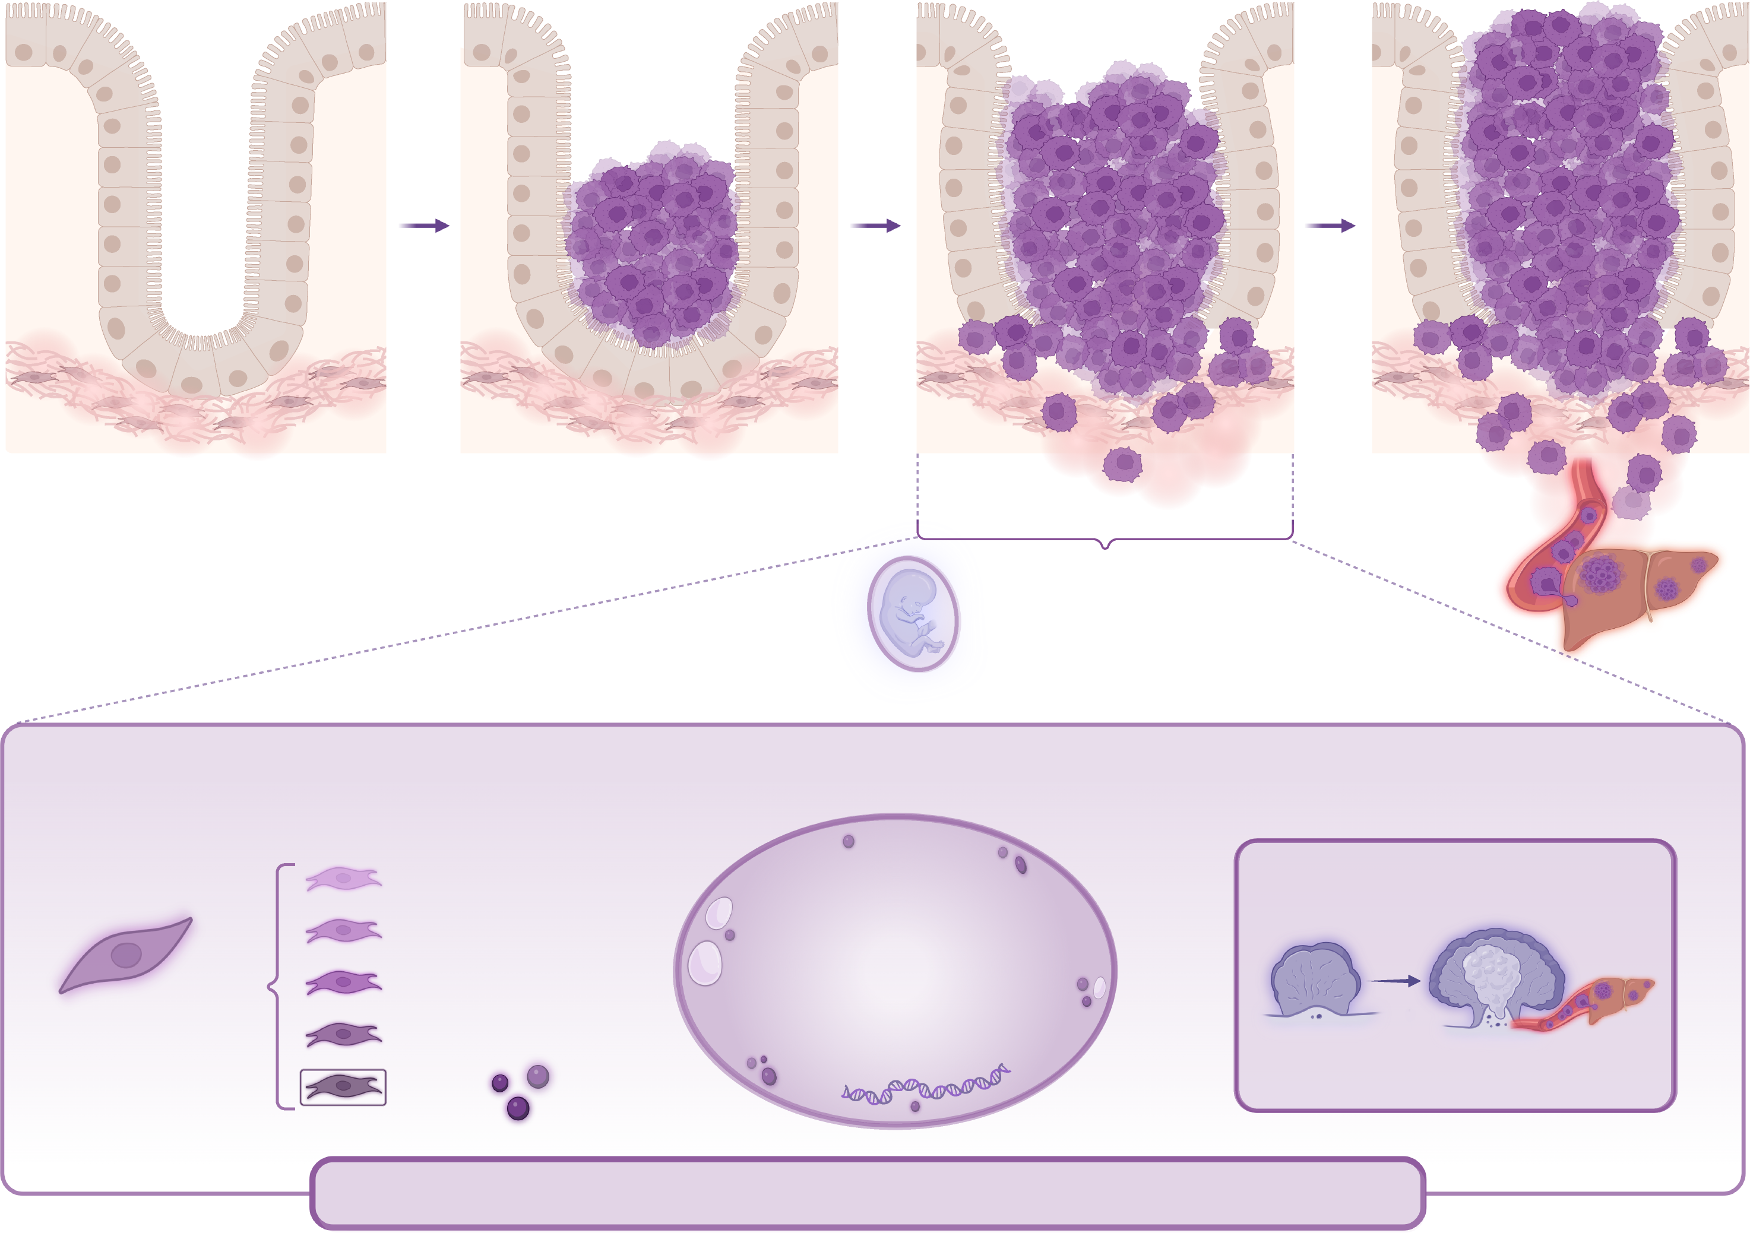
Fig. 1. Oncofetal plasticity as an early, pre-metastatic feature of colorectal cancer Schematic illustrating the emergence of oncofetal plasticity during early colorectal cancer progression. Fibroblast lineage reprogramming occurs at the invasive front of early lesions, where tumor cell interactions with cancer-associated fibroblasts (CAFs) through stromal signaling factors, including TGF-β and PGE2, promote activation of the oncofetal program. This process is associated with the induction of fetal-like gene expression signatures, including EMP1, ANXA1, LAMC2, and MMP7, as well as developmental and cellular plasticity pathways that contribute to metastatic disease progression.(图注取自PDF文本层,来源:Cancer Cell, 2026)
2. 是内在驱动还是外部诱导?——类器官+基因组测序排除了前者
那 OnF 是怎么来的?作者要区分肿瘤本身的内在驱动和微环境的外部诱导。
他们从正常组织、腺瘤、肿瘤核心和侵袭前沿分别建了类器官。全基因组测序比较肿瘤核心和侵袭前沿的突变和拷贝数变异,结果:基因组进化是静态的,找不到明显的侵袭相关遗传驱动因素。功能上,两类类器官对关键信号通路的依赖性也相似。
这些结果排除了细胞内在机制的差异,指向非细胞自主性机制——也就是微环境在起作用。
@方法论点评:这里用了"类器官+基因组+功能"三重验证来排除内在驱动因素。很多时候肿瘤异质性被归因于基因突变积累,但这里通过多区域比较证明侵袭前沿的特异性状态不是基因决定的,推理链条很扎实。
3. 那微环境里谁在搞事情?——CAF 亚型的空间分工
作者接着用单细胞测序比较了肿瘤核心和侵袭前沿的 TME 细胞类型差异,发现成纤维细胞的空间分布差异很大。
侵袭前沿只有一种特殊的滋养细胞亚型(trophocyte,表达 SFRP2+、GREM1+、RSPO3+),而肿瘤核心则富集另一种端细胞亚型(telocyte,表达 SOX6+、BMP4+、WNT5A+)。
进一步分层发现,trophocyte 亚型按 MMP 表达状态又分两群:MMP- 的在侵袭前沿的基质侧,MMP+ 的在肿瘤侧,且与 OnF 细胞共定位最强。而且这个 MMP+ trophocyte 高表达 TME-高复发特征,与更差预后相关。
@方法论点评:这里"空间分型"做得很细——不只是发现 CAF 有不同亚型,还精确到它们在组织中的位置差异,并且用预后数据把分子特征和临床结局联系起来,增加了因果推断的说服力。
4. 体外验证:TGF-β 和 PGE2 是 OnF 的直接开关
为了验证 CAF 是否真的在"教唆"癌细胞进入 OnF 状态,作者做了共培养实验。
在筛选的候选配体中,TGF-β 和 PGE2 两个因子,单独或协同作用,都能在共培养的肿瘤类器官中诱导 OnF 状态。
更有意思的是,CAF 亚型的建立和激活似乎是早期协调事件,与癌细胞首次获得可塑性同步,并在整个疾病进程中持续存在。作者还提供了线索,提示这些 CAF 亚型可能来源于黏膜下层的滋养细胞。
@方法论点评:共培养实验是因果验证的关键一步。这里不仅仅是"相关",而是通过配体筛选找到了具体的分子介质,并且验证了协同效应,这在机制研究中是很扎实的设计。
5. 一个有意思的矛盾点——RSPO3 和 LGR5 去哪儿了?
这里有个值得琢磨的问题:GREM1+RSPO3+ 滋养细胞正常功能是维持 LGR5+ 干细胞的微环境,但 LGR5+ 和 OnF 肿瘤细胞在空间上几乎是互斥的。那为什么 RSPO3+ 的 CAF 会跟 OnF 共定位而不是跟 LGR5+ 肿瘤细胞共定位?
作者没有直接回答这个问题,但文中提出了几种可能的解释:要么 MMP+ 亚型的功能分泌组发生了重组;要么 OnF 细胞的 LGR5 水平很低,对 RSPO3 没反应;要么 TGF-β 和 PGE2 的信号盖过了经典的 RSPO3 信号。
@方法论点评:这里体现了"不回避矛盾数据"的科研态度。如果一个模型预测 RSPO3+ CAF 应该跟 LGR5+ 细胞在一起,但实际看到的不是这样,那要么模型需要修正,要么有新的调控层级。留白给未来研究,反而比强行解释更有价值。
核心结论
OnF 细胞状态在结直肠癌极早期(T1期)就已普遍出现,转移前就有,不是晚期才有的特征。 这种状态不是由基因突变驱动的,而是由微环境中特定 CAF 亚型通过 TGF-β 和 PGE2 信号诱导产生。 CAF 存在空间功能分工:MMP+ trophocyte 位于肿瘤侧,与 OnF 细胞共定位,是主要的"诱导者"。 OnF 状态可能是转移的必要非充分条件——有 OnF 不一定会转移,但转移可能离不开 OnF。
对耐药/DTP/PGCC 的启示
DTP 状态可能是 OnF 的另一种面孔。DTP 细胞的特征之一是"可塑性"——能在药物压力下进入慢循环/休眠状态。OnF 状态也涉及细胞命运的重编程,且由微环境信号诱导而非基因突变驱动。提示 DTP 可能在某些情况下就是微环境诱导的 OnF-like 状态。这种状态下,细胞的"身份"是动态的,靶向单一标志物可能打不干净。 TGF-β/PGE2 双通路是干预靶点。如果 OnF 状态是早期建立、由两个因子协同维持,那么单独阻断 TGF-β 或 PGE2 可能效果有限。这对设计"预防性"干预策略有启发:在早期肿瘤中阻断 OnF 的建立,可能比等到转移后再处理更有效。 PGCC 与 OnF 的关系待解。多倍体巨细胞(PGCC)也是化疗后耐药的标志之一,常伴随胚胎/再生相关基因的激活。文中提到的 YAP/TAZ 通路在 OnF 中发挥作用,而 YAP/TAZ 也与 PGCC 形成有关。二者是否有共享的上游信号或重叠的标志物谱,文中未涉及,但值得关注。
局限
CAF 亚型的来源和演化轨迹是基于转录组数据推断的,未做谱系追踪实验验证。 OnF 细胞在转移后能进入哪些状态(休眠 vs 生长)仍未阐明。 免疫逃逸被提出是 OnF 与转移播种之间的另一道屏障,但机制未解。 TGF-β 来源的区分问题:TGF-β 可以由 CAF 产生,也可以由癌细胞自身产生,共培养体系中两者叠加效应如何区分?文中未拆解。
来源
期刊:Cancer Cell,2026。DOI: 10.1016/j.ccell.2026.05.011